在糖生物学、糖蛋白修饰及细胞代谢调控研究中,核苷酸糖作为重要的活化糖供体,参与多种糖基转移反应。其中,**UDP-GlcNAc(Uridine Diphosphate N-Acetylglucosamine,尿苷二磷酸-N-乙酰葡萄糖胺)**是细胞内具有重要生物学功能的核苷酸糖之一,广参与蛋白质糖基化、糖胺聚糖合成及糖链结构构建等过程。
UDP-GlcNAc不仅是多种糖基转移酶识别和利用的糖基供体,也是连接葡萄糖、氨基酸、脂质及核苷酸代谢的重要分子。其细胞内水平与己糖胺生物合成途径(Hexosamine Biosynthetic Pathway,HBP)密切相关,因此在研究细胞代谢状态、蛋白质翻译后修饰及糖基化调控机制时具有重要意义。
瑞禧生物UDP-GlcNAc相关科研试剂可作为糖基化反应、酶学分析及糖生物学研究中的候选底物。通过研究其分子结构、理化性质、糖基转移机制及代谢调控过程,有助于理解核苷酸糖在复杂生物体系中的作用。
本文从UDP-GlcNAc的分子组成、化学性质、生物合成途径、糖基转移反应、O-GlcNAc修饰机制及实验应用等方面展开介绍,并结合结构示意、对比表格和代谢流程图,对其科研价值进行系统分析。
一、UDP-GlcNAc的分子结构与基本组成
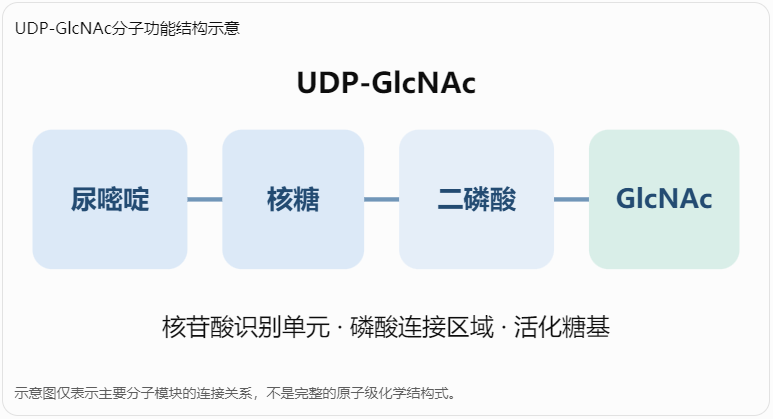
UDP-GlcNAc是一种核苷酸糖,由尿苷二磷酸(UDP)与N-乙酰-D-葡萄糖胺(GlcNAc)通过糖基磷酸酐相关连接结构组成。
其结构包含尿嘧啶碱基、核糖、二磷酸连接单元以及N-乙酰葡萄糖胺四个主要部分。
1. 尿苷二磷酸结构
尿苷二磷酸部分由尿嘧啶碱基、核糖及二磷酸结构构成,是多种糖基转移酶识别核苷酸糖供体的重要结构区域。
UDP部分不仅影响底物与酶的结合,还在糖基转移过程中发挥离去基团相关作用。
2. N-乙酰葡萄糖胺结构
GlcNAc是一种含有N-乙酰基的氨基糖,其C2位具有乙酰氨基取代结构。
这一特征使其区别于普通葡萄糖,也使其能够参与特定糖链和糖蛋白结构的形成。
3. 二磷酸连接区域
UDP与GlcNAc通过磷酸相关连接结构相连,使GlcNAc以活化糖供体的形式参与酶催化糖基转移。
在合适的糖基转移酶作用下,GlcNAc基团能够被转移至特定受体分子,生成相应糖苷键。
二、UDP-GlcNAc的主要理化性质
UDP-GlcNAc的分子结构中含有多个羟基、磷酸基团及其他极性官能团,因此具有较强的亲水性。
|
性质项目 |
主要信息 |
|---|---|
|
中文名称 |
尿苷二磷酸-N-乙酰葡萄糖胺 |
|
英文名称 |
UDP-N-Acetylglucosamine |
|
常用缩写 |
UDP-GlcNAc |
|
游离酸分子式 |
C₁₇H₂₇N₃O₁₇P₂ |
|
游离酸相对分子质量 |
约607.35 |
|
分子类型 |
核苷酸糖、活化糖供体 |
|
溶解特征 |
亲水性较强,通常适用于水相体系 |
|
主要生物学作用 |
为多类糖基转移反应提供GlcNAc |
需要注意,实际科研产品可能采用游离酸形式或不同盐型。不同盐型的分子量、计量方式及溶解特征可能存在差异,不能直接使用游离酸分子量计算所有产品的称量浓度。
水相环境与稳定性
UDP-GlcNAc通常用于水相酶促反应体系,但其稳定性会受到pH、温度、储存时间及溶液组成影响。
对于需要定量分析的实验,建议根据产品说明书配制溶液,并减少不必要的反复冻融。长期储存条件应以瑞禧生物对应产品批次的技术资料为准。
三、UDP-GlcNAc的生物合成途径
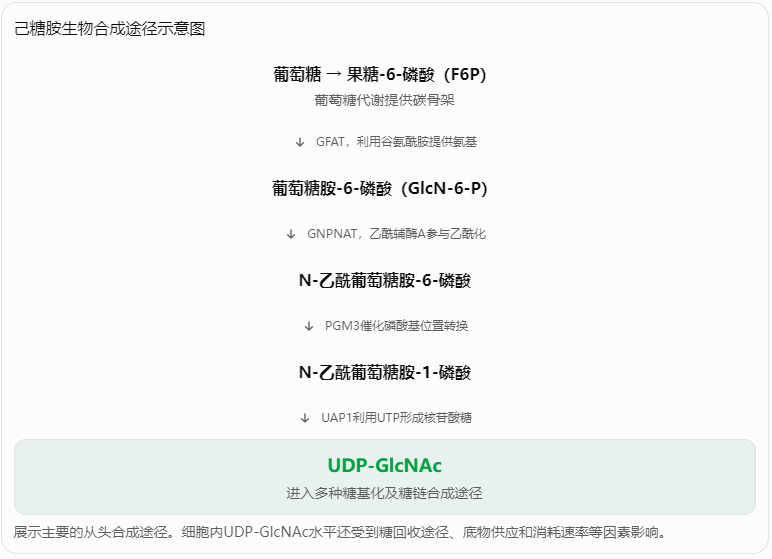
UDP-GlcNAc主要通过己糖胺生物合成途径(HBP)形成。该途径连接葡萄糖代谢、谷氨酰胺代谢、乙酰辅酶A代谢及核苷酸代谢,是细胞合成活化氨基糖的重要代谢网络。
GFAT:己糖胺代谢的重要调控环节
GFAT(谷氨酰胺:果糖-6-磷酸氨基转移酶)催化果糖-6-磷酸向葡萄糖胺-6-磷酸的转化,是HBP的重要调控节点。
这一反应使葡萄糖代谢与谷氨酰胺代谢发生联系。当细胞营养状态发生变化时,HBP的代谢通量可能随之改变。
但细胞葡萄糖浓度增加,并不意味着UDP-GlcNAc含量一定按比例上升,因为该途径还受到酶活性、反馈调节及其他代谢底物的共同影响。
GNPNAT与PGM3:中间产物的转化
GNPNAT参与葡萄糖胺-6-磷酸的乙酰化,形成N-乙酰葡萄糖胺-6-磷酸。随后PGM3催化磷酸基位置转换,形成N-乙酰葡萄糖胺-1-磷酸。
这些步骤为终核苷酸糖的形成提供必要的中间产物。
UAP1:UDP-GlcNAc的形成
UAP1(UDP-N-乙酰葡萄糖胺焦磷酸化酶)催化N-乙酰葡萄糖胺-1-磷酸与UTP反应,生成UDP-GlcNAc和焦磷酸。
这一过程将糖基转化为能够被多种糖基转移酶利用的活化供体。
四、UDP-GlcNAc参与糖基化的反应机制
糖基化是指在酶的催化下,将糖基转移至蛋白质、脂质或其他糖链受体的过程。
UDP-GlcNAc在其中发挥糖基供体作用,能够参与多种糖苷键的形成。
典型糖基转移反应
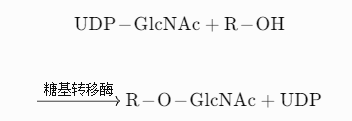
其中,R–OH表示具有适当受体羟基的分子。具体糖苷键构型和连接位置由糖基转移酶及受体结构决定。
UDP-GlcNAc的作用并不局限于单一糖基化形式。不同糖基转移酶能够识别不同受体,使GlcNAc参与蛋白质糖链、细胞表面糖复合物和细胞外基质相关多糖的合成。
五、UDP-GlcNAc的主要糖基化应用方向
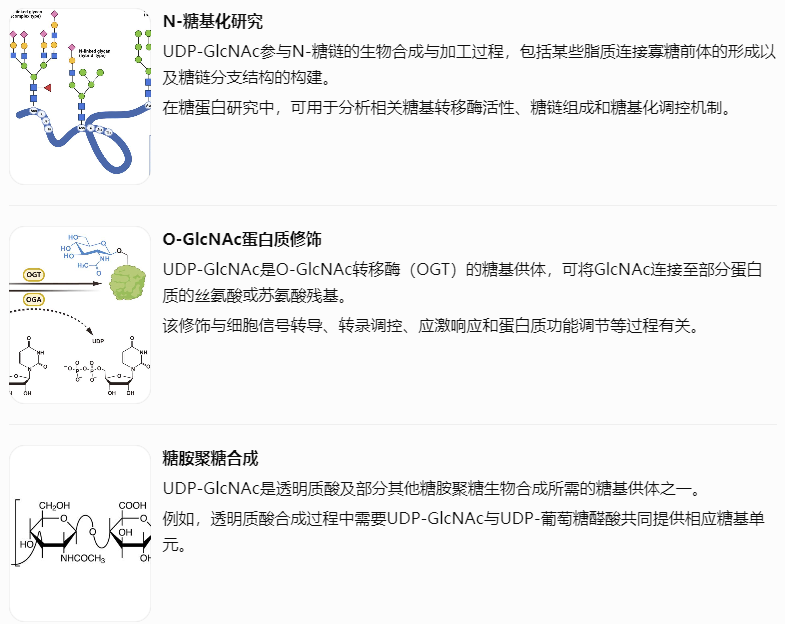
不同糖基化途径的功能比较
|
研究方向 |
UDP-GlcNAc的作用 |
主要关注指标 |
|---|---|---|
|
N-糖基化 |
提供GlcNAc糖基单元 |
糖链结构、分支及蛋白功能 |
|
O-GlcNAc修饰 |
OGT的糖基供体 |
修饰水平、位点及动态变化 |
|
糖胺聚糖合成 |
参与多糖链构建 |
多糖组成、分子量及合成活性 |
|
糖脂与糖复合物 |
参与特定糖链形成 |
糖链组成及细胞表面特征 |
六、UDP-GlcNAc与O-GlcNAc动态修饰机制
O-GlcNAc修饰是UDP-GlcNAc研究中的重要方向之一。与许多发生于内质网或高尔基体的复杂糖链加工过程不同,O-GlcNAc修饰广存在于细胞核、细胞质等区域的蛋白质上。
该修饰具有动态可逆的特点,主要受到两类酶的调节:
-
OGT(O-GlcNAc转移酶): 使用UDP-GlcNAc作为糖基供体,将GlcNAc连接至蛋白质。
-
OGA(O-GlcNAcase): 催化去除蛋白质上的O-GlcNAc修饰。
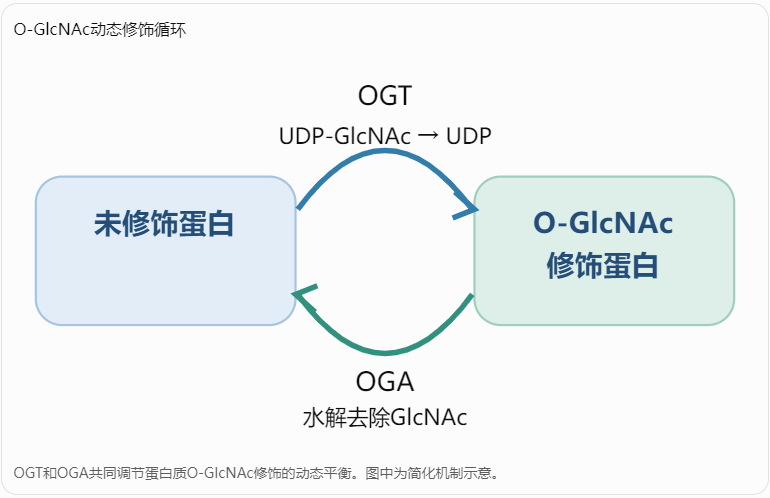
O-GlcNAc修饰与蛋白质功能
O-GlcNAc修饰可能影响蛋白质的稳定性、相互作用、亚细胞定位及活性。
在部分蛋白质中,O-GlcNAc修饰与磷酸化修饰之间存在相互影响,但两者并非始终处于简单竞争关系。
某些修饰位点可能发生直接竞争,另一些情况下则可能通过改变蛋白质构象或调控相关酶的活性产生间接作用。
O-GlcNAc修饰与细胞代谢
由于UDP-GlcNAc的形成与多条代谢途径有关,O-GlcNAc修饰常被用于研究营养状态与细胞信号调控之间的联系。
然而,细胞内UDP-GlcNAc浓度与蛋白质O-GlcNAc修饰水平并不总是简单的正比例关系。OGT和OGA活性、底物蛋白可及性及细胞内定位等因素均可能影响终修饰程度。
七、UDP-GlcNAc在糖基转移酶实验中的应用
在体外糖基化研究中,UDP-GlcNAc可以作为特定糖基转移酶的供体底物,用于研究酶催化活性、底物识别及反应动力学。
常见酶促实验流程
选择目标糖基转移酶
明确酶的底物需求及反应特征⬇️配置UDP-GlcNAc与受体底物
根据酶学体系确定底物组成⬇️进行酶催化糖基转移
优化缓冲液、温度及反应时间⬇️产物检测与分离
采用色谱、质谱或适当的偶联检测方法⬇️酶活性与动力学分析
评价反应速率、底物转化及产物形成底物浓度与酶促反应速率
对于符合经典米氏动力学假设的单底物简化体系,反应初速度可以表示为:
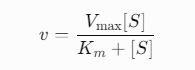
其中,\(v\) 表示初始反应速率,\(V_{\max}\) 表示大反应速率,\([S]\) 表示底物浓度,\(K_m\) 为米氏常数。
对于实际的糖基转移酶,通常还涉及糖供体和受体两个底物,因此测定UDP-GlcNAc的表观动力学参数时,需要控制受体浓度等实验条件。
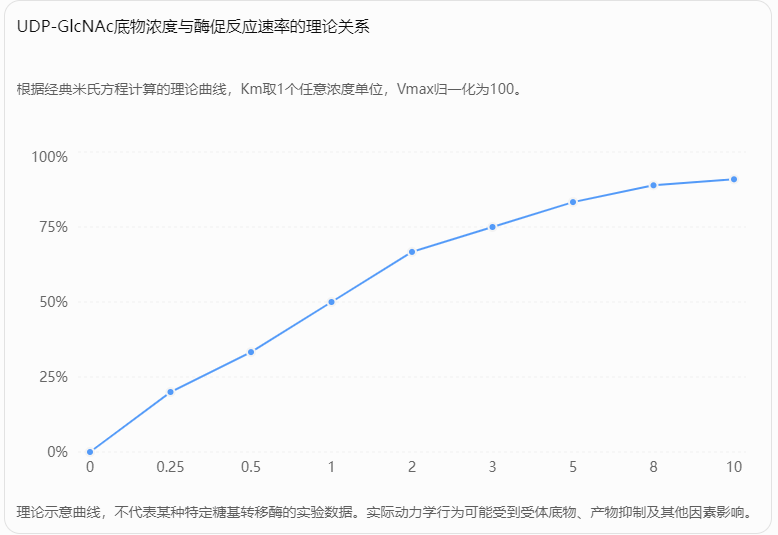
当底物浓度较低时,反应速率通常对底物浓度变化较为敏感。随着底物浓度提高,酶逐渐趋于饱和,反应速率的增长幅度减小。
通过设置合理的底物浓度梯度,可以获得用于拟合动力学参数的数据,但应确保反应处于适当的初速度测定区间。
八、UDP-GlcNAc糖基化研究的实验检测方法
UDP-GlcNAc相关研究需要根据实验目的选择合适的检测方法。对于核苷酸糖含量分析、酶催化产物鉴定和蛋白质糖基化水平评价,所采用的技术并不完全相同。
|
研究目标 |
常用分析技术 |
主要检测内容 |
|---|---|---|
|
UDP-GlcNAc含量测定 |
HPLC、LC-MS/MS |
核苷酸糖含量及变化 |
|
糖基转移酶活性 |
色谱、质谱、偶联酶法 |
底物消耗与产物生成 |
|
O-GlcNAc修饰检测 |
抗体检测、化学酶法标记 |
蛋白质修饰水平 |
|
糖基化位点分析 |
富集结合质谱 |
糖基化位点及修饰肽段 |
|
糖链组成分析 |
糖组学质谱、色谱 |
糖链组成与结构 |
|
代谢通量研究 |
稳定同位素示踪 |
代谢底物对糖供体合成的贡献 |
LC-MS/MS分析
液相色谱-串联质谱技术可用于检测细胞或组织样品中的UDP-GlcNAc。
该方法具有较高的分析选择性,但需要关注样品提取、基质效应、标准品校准以及结构相近核苷酸糖的色谱分离。
特别是UDP-GlcNAc与UDP-GalNAc等同分异构体,在质谱分析中可能具有相近的碎裂特征,因此需要采用适当的分离方法,避免误判。
O-GlcNAc修饰检测
蛋白质O-GlcNAc修饰可通过特异性抗体、化学酶法标记及质谱等方法进行研究。
抗体检测适合分析整体或特定蛋白质的修饰变化,但不同抗体可能具有不同的识别偏好。
对于精确位点研究,通常需要结合适当的富集技术和质谱分析方法。
九、影响UDP-GlcNAc糖基化实验的关键因素
底物纯度与盐型
不同纯度、盐型及水合状态可能影响底物实际摩尔浓度。定量实验应根据对应产品的分子量和纯度进行计算。
温度与pH
不同糖基转移酶具有不同的适宜反应条件。反应环境既影响酶活性,也可能影响底物稳定性。
反应时间与产物积累
反应时间过短可能导致产物信号不足,过长则可能出现底物耗尽或产物抑制,影响动力学分析。
辅因子与缓冲液组成
部分糖基转移酶需要特定金属离子或其他反应条件,另一些则不依赖这些组分。应根据目标酶的已知催化机制选择体系。
十、瑞禧生物UDP-GlcNAc的科研选型与应用思路
在UDP-GlcNAc科研试剂的选型过程中,应结合实验目标、检测方式和对试剂纯度的要求进行综合考虑。
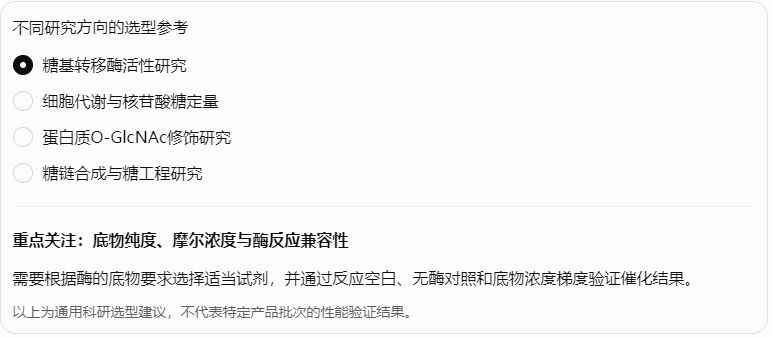
对于瑞禧生物UDP-GlcNAc相关试剂,还应重点核对产品名称、CAS号、盐型、分子量、纯度、溶解方式及储存条件。
如果用于高精度定量研究,应确认试剂是否适合作为分析标准品;如果用于酶学研究,则需要考虑可能影响酶反应的杂质和缓冲液组分。
十一、UDP-GlcNAc在糖生物学中的研究展望
糖基化与细胞代谢的关联研究
UDP-GlcNAc作为HBP的重要产物,为研究营养代谢与蛋白质糖基化之间的关系提供了分子切入点。
结合代谢组学和糖蛋白质组学技术,可以进一步分析核苷酸糖水平变化与糖基化调控之间的关联。
O-GlcNAc修饰的功能研究
随着蛋白质修饰位点分析技术的发展,O-GlcNAc修饰在细胞信号、蛋白质相互作用及代谢调节中的作用受到持续关注。
利用适当的酶学和蛋白质组学方法,可以研究不同细胞状态下O-GlcNAc修饰的变化及其功能意义。
糖链结构的酶法合成
UDP-GlcNAc能够作为特定糖基转移酶的供体底物,为复杂糖链及功能糖复合物的酶法合成提供基础材料。
通过组合不同糖基转移酶及糖供体,可探索具有特定连接方式和结构特征的糖链合成路线。
核苷酸糖代谢与疾病机制研究
异常糖基化与多种疾病相关的细胞过程存在联系,但这种联系往往涉及复杂的代谢网络和信号调控机制。
因此,在疾病相关研究中,需要区分UDP-GlcNAc含量变化、糖基化修饰变化和疾病表型之间的相关性与因果关系,避免仅依据单一代谢指标得出结论。
十二、总结
UDP-GlcNAc是一种重要的活化核苷酸糖,其分子结构由尿苷二磷酸和N-乙酰葡萄糖胺组成,能够作为多类糖基转移酶的糖基供体,参与蛋白质糖基化、糖胺聚糖合成及其他糖复合物的构建。
从代谢角度来看,UDP-GlcNAc的形成与己糖胺生物合成途径密切相关,能够连接葡萄糖、谷氨酰胺、乙酰辅酶A及核苷酸代谢。从功能角度来看,其参与的O-GlcNAc修饰是研究细胞代谢与蛋白质功能调控的重要方向。
瑞禧生物UDP-GlcNAc相关科研试剂可作为糖基化酶学研究、核苷酸糖分析及糖链合成实验的候选材料。实际应用中,应根据具体产品的结构、盐型、纯度及实验用途合理选择,并通过适当的分析方法验证反应结果。
随着糖组学、代谢组学和蛋白质修饰分析技术的不断发展,UDP-GlcNAc将在糖链生物合成、酶催化机制及细胞代谢调控研究中继续发挥重要作用。